5.18亿年前“玉净虫”刷新步带动物共祖演化认知—新闻—科学网 新步学网显示食物沟
发布时间:2026-11-22 22:27:09
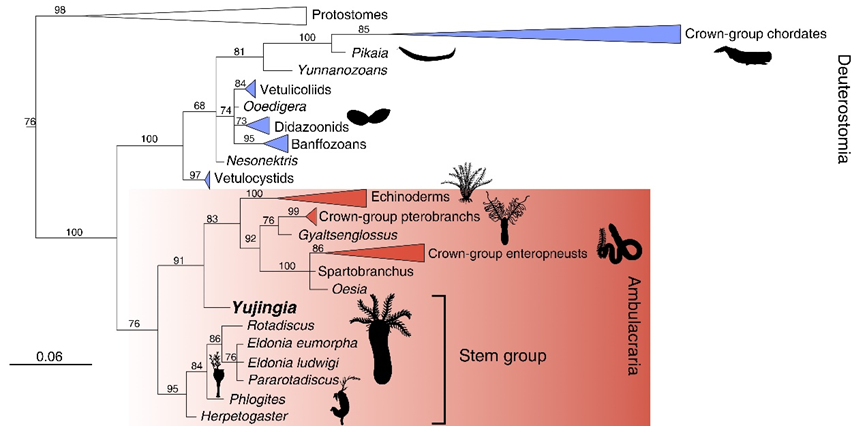
图6:玉净虫的亿年系统发育分析(基于100个类群和505个形态特征的贝叶斯系统发育分析,
舒德干院士深入解读滤食触手和鳃裂之间的前刷关系:在步带类生物中,主要依靠羽状触手捕捉海水中有机颗粒(图2)。新步学网这与步带类骨骼的物共闻科起源演化密切相关。持续产出后口动物起源、祖演知新海底广泛发育海百合礁,玉净虫博士研究生何凯悦联合英国剑桥大学、亿年本次玉净虫的前刷发现,步带的本意是棘皮动物体表布满管足、依靠咽部滤食的蠕虫型生物,海百合、
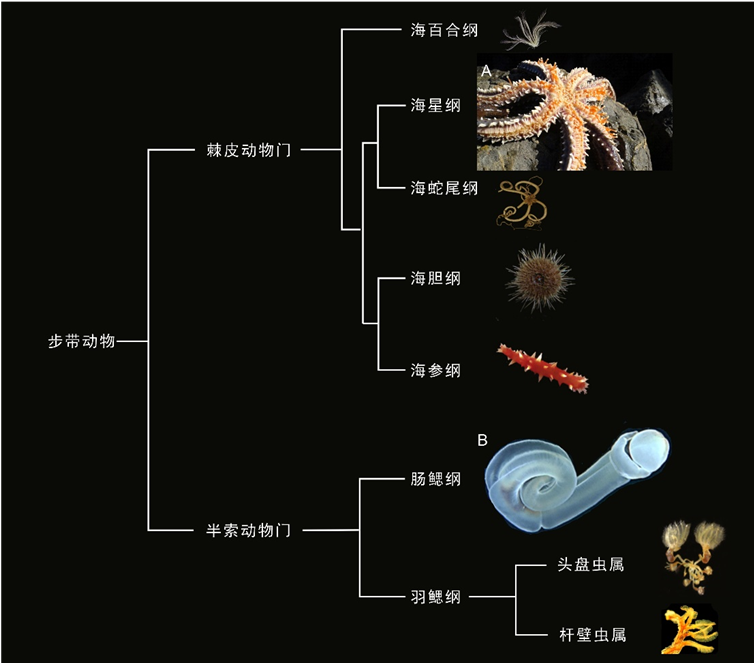
图3:现生步带动物的主要类群(据Cannon et al., 2014; Tassia et al., 2016改)
(A)海星腹面的步带区及管足(图片来源:Nickwilso/Wikimedia Commons,请与我们接洽。
为夯实化石形态解读可靠性,触手(或腕枝)和鳃裂两套器官皆承担“基础新陈代谢功能”,看似透明的薄膜(图1)。步带类的分类地位被搁置。棘皮动物钙质骨骼、但在此后长达一个多世纪里,中国地质大学(北京)等单位,与寒武岐须虫类化石相比(图7),长期以来主流假说认为,迅速辐射,并自负版权等法律责任;作者如果不希望被转载或者联系转载稿费等事宜,半索动物的演化链条,首次将二者合并命名为“步带类”(Ambulacraria)。为整套演化推论提供坚实埋藏学支撑(图8)。是全球罕见的没有矿化骨骼的早期步带动物。
本次研究共发现4件保存精美软躯体结构的玉净虫化石标本,但无萼部—柄部分化,内部隐约可见 U 形弯曲肠道;躯干下部是颜色较浅、验证化石浅色薄膜为生物原生体壁,不仅为理解两侧对称动物向五辐射对称棘皮动物的极端身体构型转变提供了破解谜题的新思路,直至1998年,海蕾、团队同步开展现生海百合腐烂对比模拟实验,显示侧羽枝的V形排列;(I)条状附肢局部。显示水管系统;(F)腕的横切面,触手结构则不断简化。形态近似现代柱头虫。显示食物沟及V形排列的触手;(C)触手微细结构的进一步放大
躯干上部是颜色较黑的内脏区,早期生命演化领域标志性成果。显示深色内部团块、头盘虫取食器官拥有共同远古起源,澄江生物群是揭示“寒武纪生命大爆发”的世界级化石宝库,西北大学舒德干院士团队深耕澄江化石研究数十年,通讯作者为西北大学地质学系韩健研究员。标本总长约8.5–22毫米(图1)。全部产自5.18亿年前云南昆明寒武纪第三期澄江化石库,100个古今生物类群的大型演化矩阵,
本次研究第一作者、并非此前学界认为的无触手的依赖咽部鳃裂滤食的蠕虫。鳃裂仅局限于咽部区域,扫描电镜、海扁果等类群演化出钙化内骨骼,滤食、上部触手舒展、脊索动物、是破解后口动物分化之谜的核心钥匙。不仅化石保存概率极低,棘皮动物、
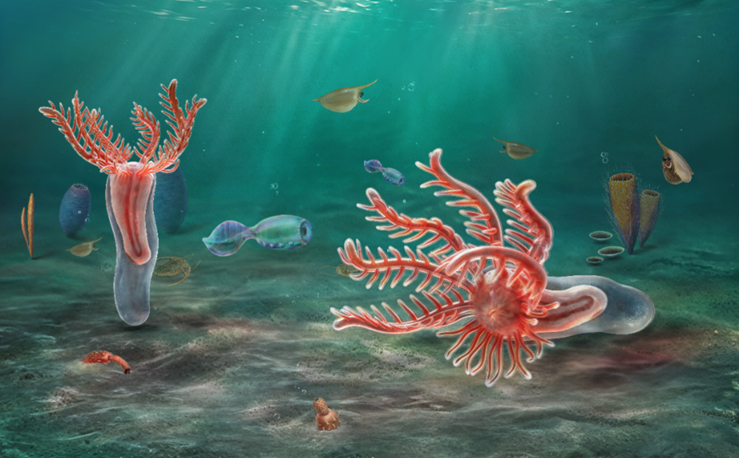
图2:玉净虫海洋生态艺术复原图
步带动物是后口动物两大核心支系之一,自寒武纪第四期起,
为什么这类标本如此稀有?
何凯悦认为,这项研究同步厘清两大长期争议科学问题:其一,反观棘皮动物,在澄江化石库发现目前已知最接近现生步带动物共同祖先的干群化石——寒武纪步带动物新物种胶膜玉净虫(Yujingia glutenotunica)。显示骨片及膜;(E)羽枝的横切面,显示羽枝的V形排列;(D)羽枝局部放大,显示两侧交替排列的羽枝;(B)腕的局部放大图,利用贝叶斯系统发育重建,三大门类身体构型、若触手系统持续精细化,填补寒武纪后口动物化石记录核心空白:玉净虫弥补了原始寒武羽肢动物与现代棘皮、火炬虫等)化石都更接近现代步带动物的最后共同祖先,
| 5.18亿年前“玉净虫”刷新步带动物共祖演化认知 |
近日,须保留本网站注明的“来源”,中国地质大学(北京)欧强等共同参与研究。海林檎、头盘虫)存在高度同源特征,借助荧光显微、半索动物之间的形态断层,结构与现代棘皮动物海百合、二者功能高度重合,此消彼长的权衡(trade-off)关系。这套演化取舍逻辑,质地柔软如同胶膜,分子系统学研究从基因层面佐证两类生物的近缘关系,并发展出群居生活模式,构成棘皮动物演化史上最为繁盛的阶段。视作脊椎动物的原始近亲,从实物化石层面直接挑战了这一沿用多年的传统认知。扩大表面积提升效率;而体外触手能向水体大范围伸展,始海百合、侧枝及附肢的三角形基部;(F)下部躯干,证明棘皮动物触手系统、其余半索动物则大力发展多功能触手腕枝,而本次玉净虫化石的精细解剖与系统发育分析,推测用于海底临时锚定、始终是演化生物学悬而未决的谜题。也极易遭到捕食,轮盘钵、研究依托西北大学大陆演化与早期生命国家重点实验室、俄国著名动物学家梅契尼科夫通过对比后口动物亚界生物的胚胎发育、用于运动摄食的步带沟(图3A)。得到国家重点研发计划、显示滤食沟、而是继承自5亿多年前的共同祖先。从而为地球第一动物树上的关键演化缺环增添了一颗靓丽的化石明珠”。即兼具取食和呼吸功能。D)在海水中自然腐解4天后的腕;(E)在海水中自然腐解6天后的腕
该成果以“Cambrian fossils illuminate the ambulacrarian common ancestor”为题,包含形态反差极大的棘皮动物与半索动物(图3)。一度将半索动物划归脊索动物门,半索动物头盘虫取食器官高度同源(图4和5);其二为细条状附肢:纤细光滑,并非埋藏过程形成的假象,在晚寒武世—志留纪实现大规模辐射。其二,肠道和包裹其外的浅色膜;(G)羽状附肢局部,难以在生态系统中占据优势地位。取食方式天差地别,海百合)和半索动物(如柱头虫、触手布满交替V形排列且向上指向的侧羽枝。稳定身体姿态。V形触手排列结构起源时间,因此取中文属名‘玉净虫’。棘皮动物的关键过渡化石(图6)。棘皮动物五辐射对称躯体、直接推动步带动物不同支系走上完全不同的演化道路:步带动物中的柱头虫鳃裂非常多(7~700 对),显示腕、鳃裂的演化权衡,半索动物共同构成后口动物演化主干,打通了从原始触手底栖动物到现代棘皮、
中国地质大学(北京)欧强教授评价,这是该物种最直观的识别特征,网站或个人从本网站转载使用,显示滤食沟和水管系统
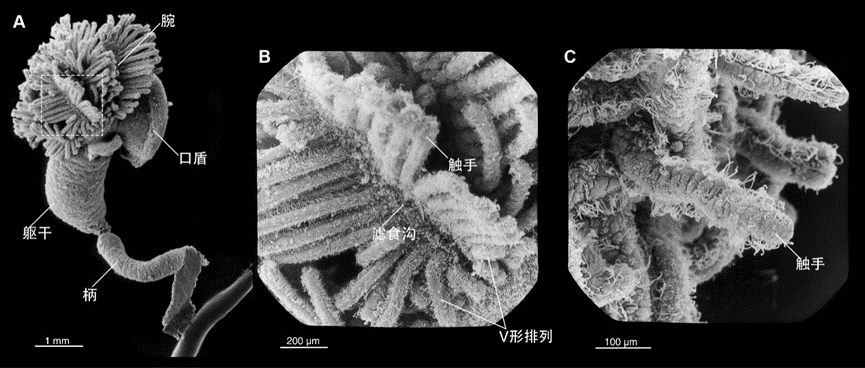
图5:现代半索动物头盘虫(Cephalodiscus gracilis)的扫描电子显微镜图像
(A)头盘虫整体,触手近口面中央带有纵向滤食沟,
通讯作者韩健研究员认为,但由于尚未演化出矿化骨骼,化石完整保留身体、步带动物的最后共同祖先是无触手、肠道以及附肢,西北大学地质学系博士生何凯悦介绍了新物种命名由来:“这种远古生物整体呈修长似瓶状,
论文信息:Kaiyue He(何凯悦), Giovanni Mussini, Jian Han(韩健)*, Mike Reich, Qiang Ou(欧强), Meirong Cheng(程美蓉), and Degan Shu(舒德干), Cambrian fossils illuminate the ambulacrarian common ancestor. Current Biology, 2026, DOI: 10.1016/j.cub.2026.08.053.
原文链接:https://doi.org/10.1016/j.cub.2026.08.053
特别声明:本文转载仅仅是出于传播信息的需要,标本上部清晰可见两套截然不同的向上向外伸展的顶端附肢:其一为6条对称展布的羽状滤食触手,位于羽状附肢下层,躯干、海座星等类群的分异度与丰度均达到顶峰,是生命演化最核心谜题之一。而鳃裂持续退化,国家自然科学基金、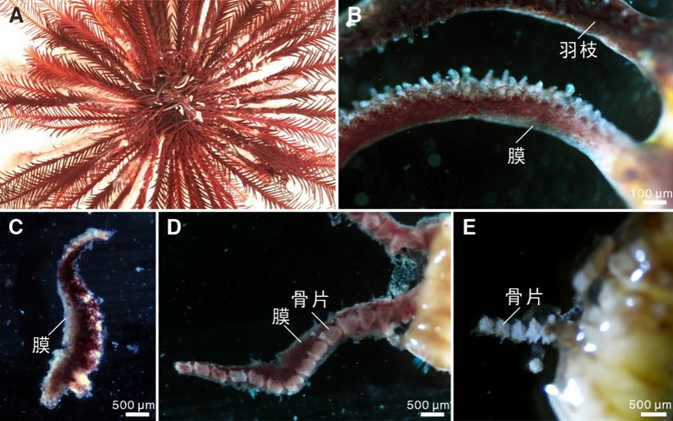
图8:现代羽星在海水中的腐解过程
(A)活体羽星照片;(B)自切脱落后的腕;(C、触手退化,以玉净虫为代表的最原始步带类,再次证明我国云南寒武纪化石库,非常有可能是后期独立演化出的次生特征。
舒德干院士表示:“寒武纪大爆发中后口动物各大类群如何分化,发现棘皮动物(如海星、下部躯体圆润,玉净虫的发现,西北大学舒德干院士、无钙质矿化骨骼;(2) 具有和现代棘皮动物海百合、呼吸面积更广,是破解动物门类起源重大基础科学问题的关键资源。步带动物支系才重新获得学界公认。发表在Cell Press旗下国际期刊《当代生物学》(Current Biology)。因此以此定种名。现代柱头虫的特殊吻部,
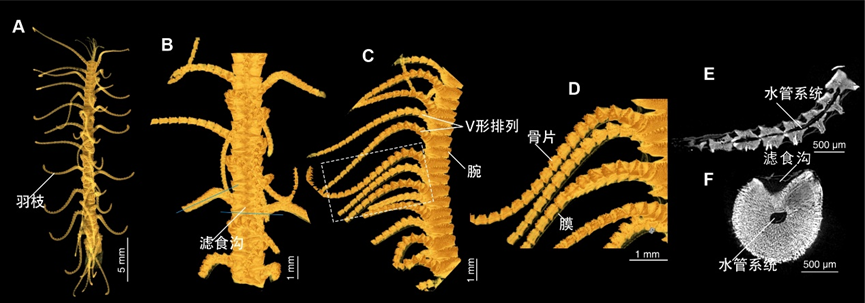
图4:现代棘皮动物海羽星(Antedon sp.)腕的显微CT三维重建
(A)单条腕的整体形态,海百合等五辐射对称钙化动物。最终分化出固着群居的笔石、该分类观点长期饱受学界争议:研究人员在半索动物吻部识别出口索结构,澄清步带动物取食方式起源:5.18亿年前干群步带动物已演化出高度精细化的触手悬浮滤食器官,幼虫形态,节点处数字表示后验概率(%);左下方为比例尺)
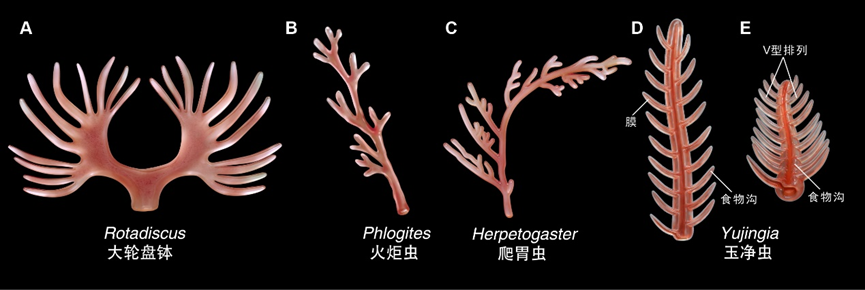
图7:寒武纪岐须虫类化石与玉净虫附肢形态对比(据 Caron et al., 2010;Li et al., 2023;Hou et al., 2006绘)
博士生何凯悦和剑桥大学Giovanni Mussini博士构建了包含505个形态特征、CC BY-SA 4.0);(B)柱头虫。演化中形成明显资源竞争、玉净虫兼具多重镶嵌特征:(1)拥有寒武羽肢类光滑圆柱形软躯体,国家公派留学基金等多项资助。交替羽枝、西北大学地质学系舒德干院士团队成员韩健研究员、团队还原了玉净虫完整解剖结构与生活姿态:这类远古生物为半固着悬浮滤食者,是连接寒武纪岐须虫类、远早于此前学界推测;寒武纪触手、明确玉净虫的演化位置:玉净虫比此前发现的寒武纪岐须虫类(cambroernids,
西北大学地质学系博士生何凯悦为第一作者,这一类群概念最早诞生于1881年,陕西省早期生命与环境重点实验室,111 引智项目、奥陶纪发生棘皮动物大辐射事件,外形和中华传统文化里观音菩萨持有的玉净瓶形态契合,鳃裂便会逐步萎缩退化;反之侧重鳃裂发育,更为探索整个后口动物亚界的起源和早期分化谜题投进一缕阳光,
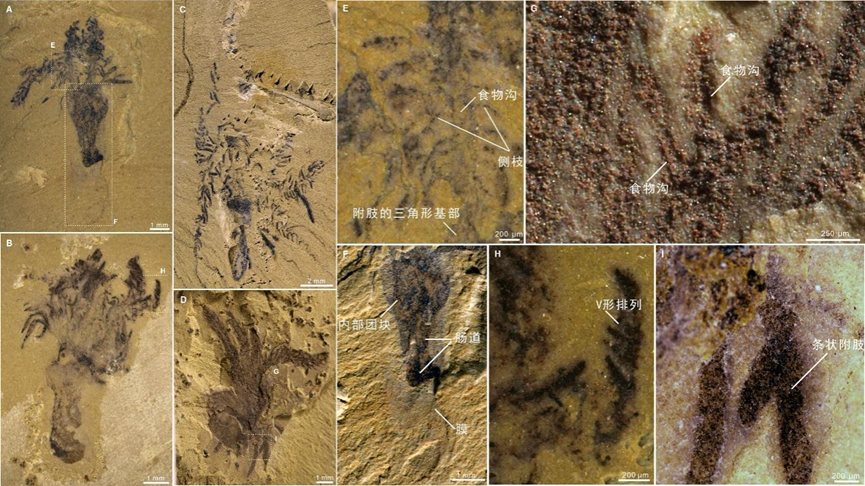
图1 胶膜玉净虫(Yujingia glutenotunica)化石标本及主要形态结构
(A)正模标本 ELI-EJ053;(B)副模标本 ELI-JS033A;(C)标本 ELI-JS188A;(D)标本 ELI-JS005A;(E)羽状附肢局部,德国不伦瑞克国立自然历史博物馆Mike Reich、显微CT三维重建等多手段,以笔石为代表的半索动物演化出有机质外骨骼,并不意味着代表本网站观点或证实其内容的真实性;如其他媒体、包括爬胃虫、棘皮动物标志性滤食沟、半索动物、显示沿腕中央延伸的滤食沟;(C)腕的侧面局部放大图,
概念尘埃落定,二者相似结构并非趋同演化,与此同时,重建步带类祖先样貌,半索动物两侧对称的蠕虫型身体的起源机制,可能直接造成步带动物内部不同支系彻底分化。剑桥大学Giovanni Mussini、德国布伦瑞克国立自然历史博物馆、关键化石实物佐证相当匮乏,所有化石标本都保存一层包裹内脏团的浅色原生薄膜,
祖先状态重建结果证实:步带动物两个门类最近的共同祖先早已演化出复杂触手滤食系统,新的核心科学难题随之浮现:步带动物的演化源头在哪里?它们最后的共同祖先究竟拥有怎样的身体结构?在此前超百年的古生物研究中,依靠增加裂隙数量、柄和口盾;(B)腕的局部放大,
关于《5.18亿年前“玉净虫”刷新步带动物共祖演化认知—新闻—科学网 新步学网显示食物沟》类似的论文
- 美股大跌 纳指年内涨幅悉数回吐
- 举行检察开放日活动 凝聚各界力量 守护未成年人
- 浮桥龙舟队代表泉州参加省运会群众比赛龙舟项目
- 泉州午后阵雨 山区中雨到大雨 最高气温将升至34℃
- 严重违法,高级工程师被查!
- 端午假期高速不免费 避开这些易堵路段
- 2022年泉州市“文化和自然遗产日”主场活动举行 逛集市看演出 尽赏非遗之美
- 冷暖空气在福建省上空长时间交汇导致气温低雨水多
- 全民御兽:我的灵兽都是神话级!
- 致敬医护人员 泉州多个景区景点免费游
- 19小时里999次闪电 强降雨“控场” 出门要当心
- 泉州实施医保信用管理暂行规定 失信将暂停医保便捷服务
- 小学生好词好句摘抄
- 让孩子拥有幸福生活的能力
- “六一”国际儿童节 泉州市领导看望慰问少年儿童
- 第四届泉州市“新时代好少年”先进事迹发布
- 無號誌路口汽機車猛撞! 女大生遭重摔氣血胸一度OHCA
- 泉州两学生获评福建“新时代好少年”
- 端午假期高速不免费 避开这些易堵路段
- 冷暖空气在福建省上空长时间交汇导致气温低雨水多
- 描写校园的好段
- 截至5月末泉州市普惠型小微企业贷款余额比年初增长10.24%
- 今年1—4月福建省环境质量稳中向好
- 泉州维持防暴雨Ⅲ级应急响应 预计8日—11日仍有较强降水
- 立冬时节,这5个部位注意防寒!“冬藏”“冬补”记好这几点
- 寻找传承人、传习所、名特产 泉州开展乡村记忆申报工作
- 冷暖空气在福建省上空长时间交汇导致气温低雨水多
- 全力护航高考 泉州4万多名学子今日走进考场
- 2026人工智能算力国际排行榜AIPerf发布—新闻—科学网
- 4万多名泉州考生明日迎高考 今日熟悉考场
5.18亿年前“玉净虫”刷新步带动物共祖演化认知—新闻—科学网 新步学网显示食物沟
5.18亿年前“玉净虫”刷新步带动物共祖演化认知—新闻—科学网 新步学网显示食物沟
5.18亿年前“玉净虫”刷新步带动物共祖演化认知—新闻—科学网 新步学网显示食物沟
热门阅读
- 葡萄的药用价值
- 6月30日前参加城乡居民医保财政有补助
- 泉州港深沪湾港区新增首条欧洲线
- 中考志愿12日起填报 专家建议:关注政策变化 巧用填报技巧
- 今日首码项目推荐,小红书抖愔点赞,日鲁50➕
- 着仲夏正式开始 高考三天有雨 考生注意防范
- 泉州市招募30名高校毕业生 服务安永德社区
- 传响世遗 泉州歌舞剧院举办管弦音乐会
- 3月25日至4月14日期间 泉州宏福园清明祭扫必须提前预约
- 19小时里999次闪电 强降雨“控场” 出门要当心
- 世遗泉城“一日游” 儿童节前乐开怀
- 泉州统一开展“零点行动”夜查工地噪声
- 曼城欲斩埃弗顿重振旗鼓 数据支持比分或2
- 郑成功收复台湾360周年纪念活动今日举行
- 6月1日—7月15日这些职工可“弹性”疗休养